L’expression « scorbut sous-clinique » désigne ici une hypothèse : un apport en vitamine C pourrait suffire à éviter le scorbut manifeste, tout en restant insuffisant pour assurer durablement certaines fonctions d’entretien et de réparation des tissus. Selon cette conception somme toute logique, les conséquences d’un manque chronique se développeraient progressivement, avant l’apparition des signes caractéristiques d’une carence sévère. C’est du bon sens qui a démarré cette théorie, puisqu’il est simple à comprendre que la mort par scorbut est une progression vers la dislocation immédiate fatale des tissus biologiques, qui évidemment n’arrive pas du jour au lendemain, mais se développe sur plusieurs semaines au mois, et cause des problèmes en amont de la phase finale.
Cette idée s’inscrit notamment dans les travaux d’Irwin Stone, qui propose dès1966 le concept d’« hypo-ascorbémie ». Son point de départ est une particularité biologique réelle : contrairement à la plupart des mammifères, l’être humain ne synthétise pas sa propre vitamine C et dépend de ses apports alimentaires. Stone envisage alors le scorbut comme l’expression extrême d’une insuffisance dont les effets pourraient commencer bien plus tôt.
Au début des années 1990, Linus Pauling et Matthias Rath développent une application cardiovasculaire de cette idée. Ils proposent qu’une insuffisance chronique d’ascorbate fragilise le collagène et la paroi des vaisseaux. Selon leur modèle, des dépôts de lipoprotéine(a) et de fibrine contribueraient à consolider cette paroi fragilisée, mais leur accumulation participerait ensuite à la formation des plaques d’athérosclérose. Leur hypothèse publiée en 1990 est prolongée en 1992 par une « théorie unifiée » des maladies cardiovasculaires.
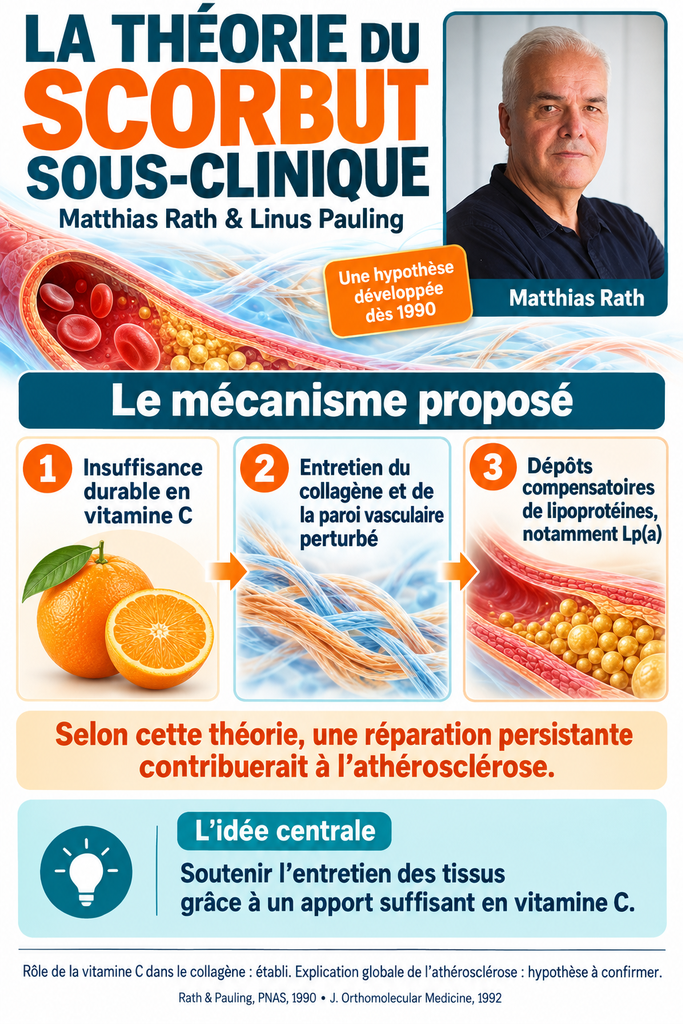
Cette théorie s’appuie sur des fonctions établies de la vitamine C : elle participe à la maturation du collagène, au fonctionnement de l’endothélium et à plusieurs mécanismes de régulation cellulaire. Cette page explore donc ses fondements, les observations qui l’éclairent et ses limites, en distinguant le rôle indispensable de l’ascorbate des explications plus générales proposées par ses défenseurs.
Matthias Rath a développé, avec Linus Pauling, une hypothèse qui place l’insuffisance chronique en vitamine C au cœur des maladies cardiovasculaires. Ses travaux associent une réalité biochimique bien établie — le rôle de l’ascorbate dans le maintien des tissus — à une proposition beaucoup plus large : une partie de l’athérosclérose est une réponse de réparation à une fragilisation nutritionnelle de la paroi artérielle. Pour présenter fidèlement cette approche, il faut distinguer ses publications expérimentales, ses propositions théoriques et leur diffusion auprès du public.
La naissance de l’hypothèse Rath–Pauling
Le point de départ est le scorbut : une carence importante en vitamine C perturbe la maturation du collagène et fragilise notamment les petits vaisseaux. Rath et Pauling proposent de prolonger ce raisonnement : une insuffisance moins sévère, mais durable, pourrait provoquer des lésions discrètes de la paroi vasculaire, avant d’entraîner les manifestations classiques du scorbut.
En août 1990, ils publient dans les Proceedings of the National Academy of Sciences l’article Hypothesis: lipoprotein(a) is a surrogate for ascorbate. Leur proposition concerne particulièrement la lipoprotéine(a), ou Lp(a). Selon leur modèle, celle-ci contribue à renforcer ou à colmater une paroi fragilisée lorsque l’ascorbate manque. Son accumulation devient toutefois défavorable en participant aux dépôts athéroscléreux. Le titre original présente explicitement cette interprétation comme une hypothèse. pubmed.ncbi.nlm.nih.gov
Dans ce raisonnement, la vitamine C entretient les structures de soutien de la paroi, tandis que la Lp(a) intervient comme un mécanisme compensatoire proposé. Il ne s’agit donc pas simplement de considérer le cholestérol comme un matériau indésirable : Rath et Pauling cherchent à expliquer pourquoi certaines lipoprotéines s’accumulent dans les artères.
Les principales étapes de ses publications
En décembre 1990, Rath et Pauling publient une étude chez le cobaye, animal dépendant, comme l’être humain, d’un apport alimentaire en vitamine C : Immunological evidence for the accumulation of lipoprotein(a) in the atherosclerotic lesion of the hypoascorbemic guinea pig. Ils rapportent des lésions artérielles lors de la restriction en ascorbate et des résultats immunologiques qu’ils interprètent comme une accumulation de Lp(a). Un apport suffisant en vitamine C prévient les lésions dans leur modèle. Cette expérience apportait déjà un argument animal indiscutable à leur proposition.
En 1991, puis en 1992, ils développent leur interprétation dans le Journal of Orthomolecular Medicine. Les titres annoncent une ambition considérable : Solution to the Puzzle of Human Cardiovascular Disease, puis A Unified Theory of Human Cardiovascular Disease Leading the Way to the Abolition of This Disease as a Cause for Human Mortality. Ils présentent l’insuffisance en ascorbate comme une cause première de fragilisation vasculaire, suivie de dépôts de lipoprotéines et de fibrine. www.dr-rath-foundation.org
Un autre article de 1992, Plasmin-Induced Proteolysis and the Role of Apoprotein(a), Lysine, and Synthetic Lysine Analogs, étend leur réflexion à la dégradation des tissus. L’approche associe alors deux objectifs : favoriser l’entretien de la matrice extracellulaire et limiter certains mécanismes de sa destruction. La lysine prend une place importante dans leurs propositions. Dr. Rath Research Institute
En 1996, Rath et Aleksandra Niedzwiecki publient Nutritional Supplement Program Halts Progression of Early Coronary Atherosclerosis Documented by Ultrafast Computed Tomography, dans le Journal of Applied Nutrition. L’étude suit 55 personnes recevant pendant un an une association de vitamines, minéraux et acides aminés. Les auteurs rapportent un ralentissement de la progression des calcifications coronaires, particulièrement dans les atteintes débutantes.
En 2015, John Cha, Niedzwiecki et Rath publient Hypoascorbemia induces atherosclerosis and vascular deposition of lipoprotein(a) in transgenic mice, dans l’American Journal of Cardiovascular Disease. Ils utilisent des souris génétiquement modifiées pour produire une Lp(a) humaine et ne plus fabriquer leur propre vitamine C. Les résultats relient une insuffisance en ascorbate aux dépôts vasculaires dans ce modèle. C’est une nouvelle expérimentation démontrant directement leur hypothèse.
La création de l’institut et l’élargissement des recherches
Selon la chronologie publiée par Rath, le Dr. Rath Research Institute est fondé en Californie en 1999, avec Aleksandra Niedzwiecki à sa direction. Ses recherches portent progressivement sur des associations de micronutriments : vitamine C, lysine, proline et autres substances, étudiées notamment pour leurs effets sur la matrice extracellulaire, l’invasion cellulaire et différents modèles de maladies. Une partie importante de ces travaux relève de cultures cellulaires et d’expérimentations animales. Dr. Rath Health Foundation
La Dr. Rath Health Foundation, créée en 2002, est une structure distincte, consacrée notamment à la diffusion de ses idées et à l’éducation sanitaire. Elle indique être financée par les bénéfices du groupe Rath, qui commercialise des compléments alimentaires. Dr. Rath Health Foundation
Les livres et leur diffusion
Rath présente ses idées au grand public dans Eradicating Heart Disease, publié en 1993, puis dans Why Animals Don’t Get Heart Attacks… But People Do!, dont une édition de 2003 est répertoriée dans les catalogues bibliographiques. En 2011, il publie avec Niedzwiecki Victory Over Cancer!, qui étend au cancer leur approche nutritionnelle des tissus et de leur dégradation. Dr. Rath Health Foundation
Ces ouvrages ont bénéficié d’une diffusion internationale et de nombreuses traductions, et le réseau éditorial de Rath revendique des millions de lecteurs. Dr. Rath Books
Quels chercheurs soutiennent cette approche ?
Le soutien scientifique direct le plus important est Linus Pauling, coauteur des textes fondateurs. Aleksandra Niedzwiecki joue ensuite un rôle central dans le développement du programme expérimental. John Cha, ainsi que Mohd Waheed Roomi et Tatiana Kalinovsky, participent à différentes publications de l’équipe, notamment sur les associations de nutriments et la matrice extracellulaire. PubMed
D’autres chercheurs apportent des éléments compatibles avec certaines de ses prémisses. Dès 1973, Emil Ginter étudie chez le cobaye le rôle de la vitamine C dans la transformation du cholestérol en acides biliaires. Ces travaux antérieurs montrent des interactions entre statut vitaminique et métabolisme lipidique. PubMed
James M. May et Fiona E. Harrison, dans leur synthèse de 2013, décrivent les fonctions de l’ascorbate dans l’endothélium : soutien du collagène, protection contre l’oxydation et maintien de la fonction de barrière. Leurs recherches confortent l’importance vasculaire de la vitamine C. pubmed.ncbi.nlm.nih.gov
Rath et Pauling : la théorie du scorbut sous-clinique
La théorie du scorbut sous-clinique propose de regarder les maladies cardiovasculaires à partir d’une question fondamentale : que devient la paroi des vaisseaux lorsque l’organisme manque durablement des ressources nécessaires à son entretien ?
Au début des années 1990, Matthias Rath et Linus Pauling développent ensemble une explication qui relie vitamine C, collagène, intégrité vasculaire et dépôts de lipoprotéines. Leur raisonnement déplace l’attention vers l’état du tissu dans lequel les dépôts apparaissent. Ils cherchent à comprendre pourquoi une paroi artérielle devient vulnérable et comment les mécanismes destinés à la protéger pourraient, avec le temps, participer à la maladie. Leur première publication commune consacrée à cette hypothèse paraît en 1990 dans les Proceedings of the National Academy of Sciences.
Du scorbut manifeste à l’insuffisance chronique
La vitamine C intervient dans la maturation du collagène, une famille de protéines essentielles à l’organisation et à la résistance des tissus. Elle contribue également au fonctionnement des cellules endothéliales, qui tapissent l’intérieur des vaisseaux. Une carence profonde provoque le scorbut, avec notamment une fragilité des tissus et des saignements.
Rath et Pauling posent alors une question : entre une alimentation suffisante et le scorbut manifeste, une insuffisance prolongée pourrait-elle affaiblir progressivement la paroi vasculaire ?
Dans leur article de 1992, ils proposent que certaines maladies cardiovasculaires correspondent à un état de « pré-scorbut ». L’apport en vitamine C permettrait de survivre sans scorbut aigu, tout en restant insuffisant pour assurer durablement l’intégrité vasculaire. Selon ce modèle, la fragilisation du tissu conjonctif et l’altération de la barrière endothéliale déclencheraient des réponses compensatoires.
La lipoprotéine(a), au centre de leur proposition
En août 1990, Rath et Pauling publient Hypothesis: lipoprotein(a) is a surrogate for ascorbate. Ils y attribuent un rôle particulier à la lipoprotéine(a), appelée Lp(a), une particule transportant des lipides et comportant une protéine supplémentaire, l’apolipoprotéine(a).
Ils proposent que cette particule puisse contribuer à stabiliser les tissus lorsque l’ascorbate fait défaut. Elle agirait comme un matériau compensatoire dans une paroi fragilisée. Cette fonction proposée ne signifie pas que la Lp(a) remplace les fonctions biochimiques de la vitamine C : elle participerait à une réponse de protection face aux conséquences de son insuffisance.
Dans leur interprétation, une réponse initialement protectrice peut devenir dommageable si la fragilité persiste. Les dépôts se poursuivent et contribuent à épaissir la paroi. L’athérosclérose serait ainsi, pour une part majeure selon les auteurs, la conséquence d’une réparation compensatoire entretenue par un déficit nutritionnel non corrigé. C’est le cœur de leur « théorie unifiée » publiée en 1992.
Les expériences qui ont nourri cette théorie
En décembre 1990, Rath et Pauling publient une étude chez le cobaye, qui dépend d’un apport alimentaire en vitamine C. Ils rapportent que la restriction en ascorbate favorise des lésions artérielles et décrivent des observations immunologiques qu’ils interprètent comme une accumulation de Lp(a) dans ces lésions. Un apport suffisant en vitamine C prévient leur apparition dans les conditions de l’expérience.
Cette publication, Immunological evidence for the accumulation of lipoprotein(a) in the atherosclerotic lesion of the hypoascorbemic guinea pig, constitue un appui expérimental initial à leur raisonnement : modifier l’apport en ascorbate peut modifier l’état de la paroi artérielle dans un modèle animal.
En 1996, Matthias Rath et Aleksandra Niedzwiecki publient une étude menée auprès de 55 personnes, suivies par imagerie des calcifications coronaires. Leur programme associe plusieurs vitamines, minéraux et acides aminés. Les auteurs rapportent un ralentissement de la progression des calcifications, particulièrement dans les atteintes débutantes. Cette étude exploratoire examine une association nutritionnelle, avec une comparaison avant et après supplémentation ; elle ne permet donc pas d’isoler la contribution de chaque nutriment.
En 2015, John Cha, Aleksandra Niedzwiecki et Matthias Rath poursuivent l’étude du mécanisme dans un modèle spécialement conçu : des souris produisant une Lp(a) humaine et incapables de synthétiser leur propre vitamine C. Leur publication, Hypoascorbemia induces atherosclerosis and vascular deposition of lipoprotein(a) in transgenic mice, rapporte des dépôts vasculaires et des lésions associés à l’insuffisance en ascorbate. Ce modèle permet d’étudier conjointement deux caractéristiques importantes pour leur hypothèse : la dépendance alimentaire à la vitamine C et la présence de Lp(a).
Pourquoi associer vitamine C et acides aminés ?
L’approche développée par Rath et Pauling s’intéresse à la fois à la construction des tissus et aux mécanismes de leur dégradation.
La vitamine C participe au fonctionnement des enzymes nécessaires à la maturation du collagène. La lysine et la proline sont des acides aminés présents dans sa structure. Leurs propositions associent donc le soutien des processus de construction à une action recherchée sur les interactions moléculaires impliquées dans les dépôts et la destruction de la matrice.
Leur article de 1992, Plasmin-Induced Proteolysis and the Role of Apoprotein(a), Lysine, and Synthetic Lysine Analogs, explore notamment les relations entre apolipoprotéine(a), lysine et dégradation des protéines. Il annonce l’élargissement ultérieur des recherches de Rath aux mécanismes de maintien de la matrice extracellulaire.
Des recherches indépendantes éclairent plusieurs éléments du raisonnement
Les travaux sur la vitamine C et les vaisseaux dépassent largement l’équipe de Rath.
En 2013, James M. May et Fiona E. Harrison, de l’université Vanderbilt, publient une synthèse consacrée au rôle de l’ascorbate dans l’endothélium. Ils décrivent notamment son intervention dans la synthèse et le dépôt du collagène IV, constituant des membranes basales, ainsi que ses effets sur la survie des cellules endothéliales, le stress oxydant et la disponibilité du monoxyde d’azote, qui participe à la dilatation vasculaire. Ces recherches apportent un contenu biologique précis à l’idée que la vitamine C contribue à l’entretien de la paroi.
En 2014, Ammar Ashor, Jose Lara, John Mathers et Mario Siervo réunissent les résultats de 44 essais cliniques randomisés dans une méta-analyse publiée dans Atherosclerosis. Ils constatent une amélioration globale de la fonction endothéliale sous vitamine C, avec des effets particulièrement présents chez des personnes atteintes d’athérosclérose, de diabète ou d’insuffisance cardiaque. Il s’agit ici d’un résultat humain sur le fonctionnement des vaisseaux, distinct d’une mesure de disparition des plaques ou de réduction des infarctus. Publication et résumé.
Ces chercheurs documentent des mécanismes et des effets compatibles avec certains éléments du raisonnement Rath–Pauling. Cela permet de relier leurs recherches, tout en attribuant à chacun les conclusions qu’il a effectivement formulées.
L’institut, les collaborateurs et les livres
Selon la chronologie publiée par Rath, le Dr. Rath Research Institute est créé en Californie en 1999, sous la direction scientifique d’Aleksandra Niedzwiecki. Les recherches s’étendent aux associations de micronutriments et à leurs effets sur les cellules et la matrice extracellulaire. John Cha, Mohd Waheed Roomi et Tatiana Kalinovsky figurent parmi les collaborateurs de différentes publications de ce programme. La Dr. Rath Health Foundation, créée en 2002, contribue à sa diffusion auprès du public.
Cette diffusion passe aussi par les livres. Eradicating Heart Disease paraît en 1993, suivi par les éditions de Why Animals Don’t Get Heart Attacks… But People Do!. Rath et Niedzwiecki publient ensuite Victory Over Cancer! en 2011. Les traductions témoignent d’une diffusion internationale ; leur réseau éditorial revendique des millions de lecteurs, sans qu’un chiffre de ventes indépendant ait pu être vérifié dans les sources consultées.
Une proposition qui ouvre des questions de recherche précises
L’intérêt de cette théorie est de placer l’entretien des tissus au premier plan : leur résistance, leur renouvellement et la capacité des cellules à réparer les dommages. Elle invite à examiner si un statut insuffisant en vitamine C peut entretenir certaines conditions favorisant les lésions vasculaires.
Il reste à déterminer dans quelles populations, à quels niveaux d’insuffisance et à quels stades de maladie ce mécanisme joue un rôle déterminant. Les bénéfices sur la fonction endothéliale et les résultats animaux ne suffisent pas à établir l’ensemble de la théorie ; de grands essais de supplémentation ont aussi donné des résultats nuls sur les événements cardiovasculaires.
Pour prolonger ce travail, une question mérite une attention particulière : comment la disponibilité de l’ascorbate influence-t-elle l’équilibre entre entretien normal de la matrice, réparation efficace et cicatrisation persistante ? Cette question permet d’examiner les différents collagènes, les membranes basales et les cellules réparatrices sans présumer à l’avance du mécanisme. Elle transforme l’intuition d’un lien entre nutrition et fragilité des tissus en un programme de recherche concret.
Vitamine C, collagène et cicatrisation : comprendre la réparation des tissus et leur rigidification
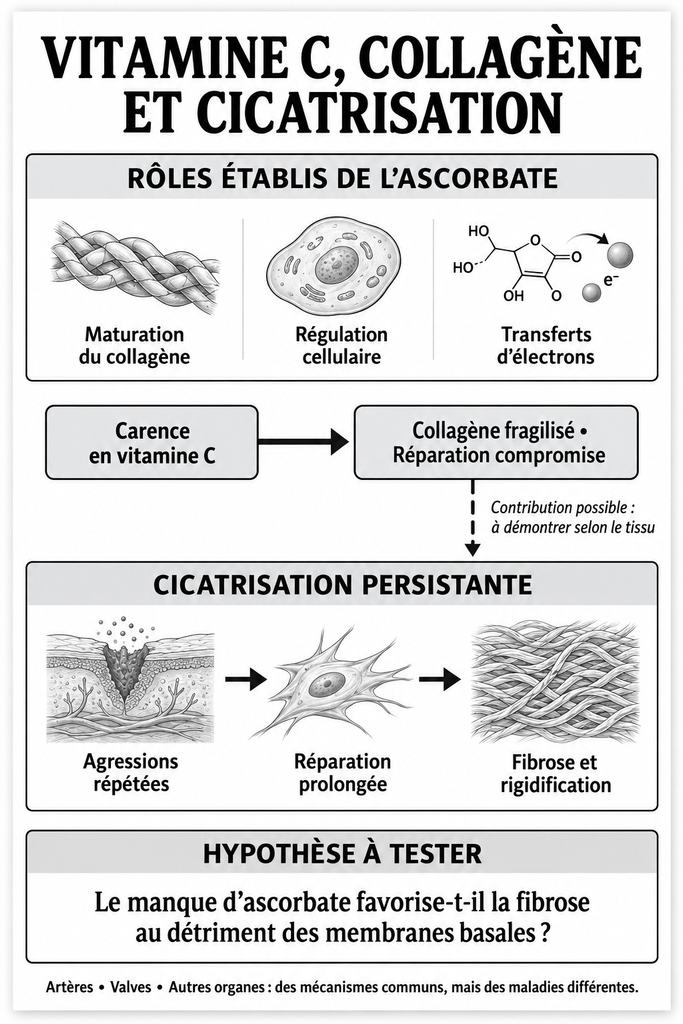
Nos tissus se renouvellent continuellement. Dans les artères, les valves cardiaques, les poumons ou les reins, les cellules entretiennent une structure de soutien appelée matrice extracellulaire. Cette matrice contient différents collagènes, de l’élastine et d’autres molécules qui assurent résistance, souplesse et échanges. La santé d’un organe dépend de leur quantité, mais aussi de leur emplacement, de leur organisation et de leur renouvellement. Une question se pose alors : un manque de vitamine C pourrait-il perturber cet entretien et favoriser une réparation imparfaite, conduisant progressivement à la fibrose et à la rigidification ? Plusieurs mécanismes rendent cette hypothèse plausible, sans établir qu’elle explique toutes ces maladies.
La vitamine C, principalement présente sous forme d’ascorbate dans l’organisme, intervient à plusieurs niveaux. Elle aide à produire un collagène correctement constitué, participe à la protection des cellules et influence certains mécanismes de régulation des gènes. Il serait donc réducteur de la considérer seulement comme un ingrédient de fabrication. Mais affirmer que son rôle serait « surtout régulateur » dépasserait également les connaissances disponibles. Ses fonctions de maturation, de protection et de régulation sont liées ; leur importance relative dépend du tissu et de son état.
Pour comprendre cette relation, il faut d’abord distinguer les collagènes. Les types I et III forment des fibres qui contribuent à la résistance des tissus. Le type IV constitue des réseaux fins dans les membranes basales, notamment sous les cellules endothéliales qui tapissent les vaisseaux. Ces réseaux soutiennent les cellules et participent à l’organisation des barrières. Il n’existe donc pas un collagène utile et un autre intrinsèquement pathologique : les collagènes présents dans les fibroses sont aussi nécessaires au fonctionnement normal. C’est leur accumulation, leur disposition et le contexte biologique qui peuvent devenir problématiques.
Le corps fabrique ses propres collagènes à partir d’acides aminés, selon les instructions de gènes différents. Le collagène alimentaire est digéré ; il apporte des acides aminés et de petits peptides, dont certains peuvent passer dans le sang. Il n’est pas transporté intact jusqu’à une valve pour remplacer directement une fibre abîmée. La cellule doit assembler ses protéines, les modifier, les exporter et organiser leur dépôt dans le tissu. L’alimentation fournit ainsi des ressources, tandis que les cellules locales réalisent et contrôlent la construction.
Une blessure déclenche un programme de réparation. Dans une plaie cutanée, la coagulation contribue d’abord à arrêter le saignement, puis les cellules immunitaires éliminent les microbes et les débris. Des signaux attirent et activent les cellules réparatrices. Les fibroblastes produisent une matrice provisoire ; certains deviennent des myofibroblastes, capables de fabriquer de la matrice et de contracter la plaie. La réparation associe donc nettoyage, reconstruction, contraction et réorganisation. Dans les organes internes, les modalités diffèrent, mais plusieurs de ces mécanismes sont communs.
Lorsque la réparation se déroule correctement, son intensité diminue après la fermeture de la lésion. Une partie des cellules activées disparaît ou change d’état, et la matrice déposée est remodelée. Dans la peau, notamment, la composition et l’organisation des collagènes évoluent pendant la maturation de la cicatrice. Le tissu récupère de la résistance, sans toujours retrouver exactement son architecture initiale. Une cicatrice représente ainsi une solution biologique efficace pour restaurer la continuité d’un tissu, mais elle peut rester moins souple ou moins fonctionnelle que ce qu’elle remplace.
La fibrose apparaît lorsque la production et la persistance de matrice deviennent excessives. Des agressions répétées, une inflammation durable ou des signaux de réparation mal interrompus peuvent maintenir les cellules dans un état producteur de fibres. La matrice s’accumule, se réorganise et se rigidifie. Cette rigidité peut à son tour stimuler les fibroblastes : ceux-ci perçoivent les contraintes mécaniques et activent des programmes qui entretiennent la fibrose. Des expériences ont identifié les relais YAP et TAZ dans cette boucle. La fibrose est donc un processus biologique actif, qui peut s’autoentretenir.
L’ascorbate intervient d’abord dans la qualité du collagène nouvellement fabriqué. Certaines enzymes modifient les acides aminés proline et lysine, permettant une maturation adaptée de la protéine. L’ascorbate contribue à maintenir leur fonctionnement. Une carence importante compromet l’intégrité des tissus, comme l’illustre le scorbut. Dans des fibroblastes pulmonaires humains en culture, le manque d’ascorbate augmente la dégradation intracellulaire du collagène insuffisamment modifié et réduit la production de collagènes I et III. La pénurie affecte donc aussi les fibres résistantes, pas seulement les membranes basales.
Cette fonction repose notamment sur des transferts d’électrons. L’ascorbate est un agent réducteur : il peut céder un électron à une cible chimique. Dans certaines enzymes de maturation du collagène, cela permet de ramener le fer oxydé vers un état compatible avec l’activité enzymatique. Il ne s’agit pas d’un courant électrique parcourant la plaie, mais de réactions moléculaires précises. Cette capacité explique une partie du lien entre vitamine C et réparation. Elle ne signifie toutefois pas que tout trouble de cicatrisation résulte d’un manque général d’électrons.
L’oxydation elle-même possède une double fonction. Un excès de réactions oxydantes peut endommager les structures cellulaires, mais certaines molécules oxydantes servent aussi de messages. Chez le poisson-zèbre, une blessure provoque un gradient local de peroxyde d’hydrogène qui contribue à attirer les cellules immunitaires. Le fonctionnement normal repose donc sur une régulation de ces signaux, dans l’espace et dans le temps. La cicatrisation n’exige pas de supprimer toute oxydation : elle nécessite une réponse proportionnée, suivie de sa résolution.
Le rôle régulateur de l’ascorbate est également documenté. Dans des cellules de tendon aviaire, son ajout augmente la transcription d’un gène du collagène I et prolonge la durée de vie de son ARN messager. Cet ARN constitue l’instruction temporaire utilisée pour produire la protéine. D’autres expériences montrent que l’ascorbate influence différemment les messages correspondant au collagène et à l’élastine. Il peut donc agir sur les quantités que les cellules sont programmées pour fabriquer, au-delà de son rôle dans la maturation des protéines déjà produites. Ces observations proviennent de modèles cellulaires.
L’ascorbate participe aussi à des mécanismes épigénétiques, qui modifient l’activité des gènes sans changer leur séquence. Il soutient notamment les enzymes TET, impliquées dans la modification de marques chimiques de l’ADN. Une étude de cicatrices humaines, complétée par des expériences sur fibroblastes, a montré qu’il pouvait corriger partiellement certaines modifications associées à un modèle de manque d’oxygène. Il intervient également dans le contrôle du système HIF, qui organise la réponse cellulaire à l’oxygène disponible. Ces résultats montrent des possibilités de régulation ; ils ne prouvent pas une restauration des valves ou des organes fibrosés chez l’humain.
Une observation empêche cependant d’assimiler l’ascorbate à un simple frein de la fibrose. En présence du signal TGF-β1, il peut renforcer la transformation de fibroblastes humains en myofibroblastes et stimuler l’expression de gènes de la matrice, notamment ceux de collagènes I et IV. Les cellules engagées dans une réparation fibreuse utilisent elles aussi la vitamine C. Son effet dépend donc du programme cellulaire en cours. Ces résultats en culture ne démontrent pas qu’une supplémentation provoque une fibrose ; ils montrent pourquoi « davantage d’ascorbate » ne signifie pas automatiquement « moins de fibres ».
L’hypothèse discutée ici est plus précise : en situation d’ascorbate insuffisant, certains tissus privilégieraient-ils une consolidation fibreuse au détriment de la restauration de leurs membranes basales ? L’image d’un bâtiment aide à comprendre cette possibilité : préserver sa tenue pourrait devenir prioritaire sur la restitution de toutes ses fonctions. Mais le collagène IV n’est pas une simple finition comparable à une peinture. Il constitue lui aussi une structure essentielle. L’analogie suggère une question de recherche ; elle ne démontre ni une décision de l’organisme ni une redistribution effective de la vitamine C.
Pour vérifier cette hypothèse, il faudrait montrer, dans un même tissu, qu’une diminution de l’ascorbate affecte préférentiellement le réseau IV tout en préservant ou stimulant les fibres I. Il faudrait mesurer les protéines réellement déposées, leur organisation, leur dégradation et le fonctionnement du tissu, puis examiner ce qui se passe lorsque l’ascorbate est rétabli. La présence simultanée de moins de collagène IV et de davantage de fibres ne suffit pas : des populations cellulaires différentes, des signaux inflammatoires ou une dégradation sélective peuvent produire cette situation. À ce stade, la priorité nutritionnelle proposée reste une hypothèse.
Dans les artères, cette réflexion rejoint en partie la théorie développée par Rath et Pauling. Ils ont proposé qu’une insuffisance chronique d’ascorbate fragilise la paroi et favorise des dépôts compensatoires, notamment de lipoprotéine(a), contribuant ensuite à l’athérosclérose. Leur article de 1990 présentait explicitement cette proposition comme une hypothèse. Elle met l’accent sur la solidité de la paroi et les mécanismes de réparation. Elle ne permet cependant pas de considérer toute plaque comme un simple pansement, ni d’attribuer l’ensemble de l’athérosclérose à une carence en vitamine C.
Un résultat expérimental apporte ici une nuance majeure. Chez des souris génétiquement prédisposées à l’athérosclérose et incapables de synthétiser leur vitamine C, une carence chronique n’a pas augmenté l’initiation ou la progression des plaques dans les conditions étudiées. Elle a en revanche fortement diminué leur dépôt de collagène, donnant une morphologie potentiellement plus vulnérable à la rupture. Le collagène peut donc aussi consolider une plaque. Cette étude animale soutient l’importance de l’ascorbate pour la structure vasculaire, tout en contestant une chaîne simple selon laquelle son manque provoquerait nécessairement davantage de fibrose et de plaques.
Dans la valve aortique, la maladie calcifiante associe perturbations endothéliales, accumulation de lipides, inflammation et transformation des cellules locales. Certaines produisent davantage de matrice ; d’autres adoptent des caractéristiques favorisant la minéralisation. Les feuillets s’épaississent et s’ouvrent moins bien. Fibrose et calcification peuvent coopérer, mais elles restent deux phénomènes distincts. Une insuffisance d’ascorbate pourrait modifier certains de ces mécanismes ; les données examinées ne démontrent pas qu’elle en soit habituellement le déclencheur chez l’humain. Les contraintes du flux sanguin et de la pression participent elles aussi directement au remodelage.
La valve mitrale illustre une autre évolution possible. Dans certaines dégénérescences, les fibres se désorganisent et les feuillets deviennent trop déformables pour fermer correctement. Des valves humaines montrent une diminution de la densité du collagène I, accompagnée d’une augmentation du collagène III et des protéoglycanes. Le tissu peut donc devenir plus épais tout en perdant sa tenue mécanique. Cette observation rappelle que les maladies valvulaires ne suivent pas toutes un chemin de rigidification. Elle ne permet pas davantage d’identifier une carence en ascorbate comme cause du changement de composition.
Dans les poumons, le foie, les reins ou le muscle cardiaque, une réparation persistante peut également transformer l’architecture et diminuer la fonction. Ces organes partagent certains programmes de fibrose, mais les agressions initiales diffèrent. Démontrer l’importance de la vitamine C dans l’entretien tissulaire ne suffit donc pas à lui attribuer une cause commune à toutes leurs maladies. De même, améliorer un mécanisme cellulaire ne garantit pas un bénéfice clinique : un grand essai de supplémentation en vitamine C n’a pas réduit les événements cardiovasculaires dans la population étudiée.
La proposition la mieux étayée est ainsi que l’ascorbate contribue à la qualité du collagène, à l’intégrité cellulaire et à plusieurs niveaux de régulation de la réparation. Une carence peut compromettre ces fonctions. La possibilité qu’elle favorise, dans certains contextes, une réparation fibreuse plutôt qu’une restauration fonctionnelle mérite d’être étudiée. En revanche, ni sa prédominance parmi les causes de fibrose, ni une priorité donnée au collagène I, ni la réversibilité des lésions par supplémentation ne sont établies. Préserver cette distinction permet de présenter une hypothèse féconde sans transformer sa cohérence apparente en preuve.
Ascorbate, collagène et réparation des tissus — ce que les études ajoutent
Complément scientifique du 27 septembre 2026, constitué par ChaGPT 6 Astra Ultra in 25 minutes.
Ce que les études ajoutent à la théorie du scorbut sous clinique
L’hypothèse d’une fragilisation progressive des tissus par insuffisance d’ascorbate possède plusieurs appuis expérimentaux précis. Des travaux indépendants des auteurs de la théorie montrent que la disponibilité de la vitamine C influence la qualité du collagène nouvellement fabriqué, certaines barrières vasculaires, la réparation des plaies et des programmes cellulaires qui commandent la reconstruction. L’enjeu est de réunir ces observations sans confondre la démonstration d’un mécanisme avec celle d’une cause générale des maladies chroniques. [42, 21, 18, 63, 47]
Une proposition se dégage : chez certaines personnes, un statut ascorbique insuffisant pourrait réduire la capacité d’entretien et de réparation, particulièrement lorsqu’une maladie, une inflammation ou une agression répétée augmente les besoins locaux. Cette formulation constitue une synthèse des résultats disponibles, à tester selon les tissus et les maladies. Elle prolonge utilement l’intuition de Stone, Rath et Pauling. Elle ne suppose ni que toutes les lésions ont la même origine, ni que leur correction serait acquise par une simple supplémentation.
Une insuffisance se mesure avant de recevoir un nom
Il faut distinguer un faible apport alimentaire, une faible concentration sanguine, un manque à l’intérieur d’un tissu et un scorbut clinique. Ces situations se recoupent, sans être interchangeables. L’expression « scorbut sous-clinique » n’est pas un diagnostic validé pour l’ensemble des maladies attribuées à une insuffisance modérée. Pour comparer les études, les termes « déplétion », « hypovitaminose C » ou « statut ascorbique bas » sont souvent plus précis.
Les expériences de Levine chez des volontaires sains montrent une relation non linéaire entre l’apport oral et les concentrations plasmatiques et cellulaires. Un apport qui évite une carence profonde ne produit pas nécessairement les mêmes concentrations qu’un apport plus élevé ; inversement, augmenter la dose entraîne des gains de concentration décroissants. La saturation du plasma ne démontre pas à elle seule l’optimum de chaque fonction tissulaire. Ces données permettent de distinguer prévention du scorbut, reconstitution des réserves et recherche d’un effet thérapeutique. [1]
Le lien entre alimentation et tissus a aussi été mesuré directement. Carr et ses collègues ont montré par biopsies que l’ascorbate du muscle humain répond à une augmentation de l’apport alimentaire. Une étude publiée en 2026 relie également le statut plasmatique au contenu en vitamine C de la peau et montre son augmentation après consommation de kiwis. Dans cette dernière étude, la densité dermique et la prolifération épidermique évoluent, mais le marqueur mesuré du procollagène I ne change pas significativement. L’intervention avant/après, sans groupe témoin parallèle, porte sur un fruit entier ; elle n’isole pas l’effet de la vitamine C. Elle soutient l’approvisionnement du tissu et certains changements fonctionnels, sans démontrer directement une augmentation de fabrication du collagène. [25, 67]
Une fragilisation progressive peut commencer par un défaut de renouvellement
L’ascorbate soutient les enzymes qui hydroxylent certaines prolines et lysines du collagène en formation. Ces transformations contribuent à sa maturation et à son organisation. Il intervient aussi dans la régulation de la production : des expériences cellulaires montrent des effets sur l’expression des gènes du collagène et sur la quantité de collagène produite. [5, 14]
En son absence, une partie du collagène nouvellement synthétisé reste mal maturée et subit davantage de dégradation à l’intérieur des cellules. Cela ne signifie pas que les fibres anciennes perdent immédiatement leurs modifications chimiques dès que la vitamine C manque. Trois phénomènes doivent être séparés : production défectueuse de nouvelles molécules, destruction de molécules nouvellement produites, et dégradation de la matrice déjà en place. [7]
Le modèle cumulatif le plus cohérent est donc celui d’un entretien devenu insuffisant : si l’usure et les agressions se poursuivent alors que le remplacement et l’organisation du collagène deviennent moins efficaces, le tissu peut progressivement perdre en qualité. C’est une interprétation mécanistique ; sa vitesse dépend du tissu, de son renouvellement et des autres agressions. Il n’existe pas de calendrier universel permettant de déduire la dégradation de chaque organe à partir du seul apport en vitamine C.
Une expérience de carence modérée montre une altération de la qualité du collagène
L’étude de Tsuchiya et Bates, publiée en 2003, est particulièrement proche de la question posée. Chez de jeunes cobayes soumis à une déplétion légère à modérée, les chercheurs ont mesuré les liaisons de maturation du collagène après quatre et huit semaines. Dans le fémur, un indicateur de teneur en collagène ne changeait pas, mais le rapport entre certaines liaisons était modifié, davantage à huit semaines. Une simple restriction alimentaire, utilisée comme comparaison, ne reproduisait pas cette modification. [21]
Ce résultat soutient une possibilité importante : un tissu peut présenter un collagène de qualité moléculaire différente sans diminution de cette teneur mesurée. Dans la peau, les résultats étaient différents, ce qui confirme qu’il faut étudier chaque tissu. L’expérience porte toutefois sur des animaux en croissance ; elle ne quantifie pas le même phénomène chez un adulte humain ni la résistance mécanique du tissu.
Des expériences humaines relient déplétion et fonctionnement des tissus
En 1990, Hevia et ses collègues ont étudié onze hommes dans une unité métabolique. Lors de périodes d’apport très faible en vitamine C, à 5 mg par jour, l’excrétion urinaire d’hydroxyproline augmentait, puis revenait vers son niveau initial après réplétion. L’hydroxyproline est liée au métabolisme du collagène : ce résultat constitue un indice expérimental humain de modification de ce métabolisme. Il ne localise pas le tissu concerné. Les auteurs jugent toutefois cette réponse trop faible pour constituer un marqueur fiable d’un déficit léger. [8]
Leggott et ses collègues ont ensuite observé, chez douze hommes suivant une alimentation contrôlée, une augmentation des saignements gingivaux pendant la déplétion, réversible après réplétion. Les changements ne s’accompagnaient pas d’une évolution correspondante des bactéries sous-gingivales étudiées. Cette observation relie directement le statut en ascorbate à une manifestation tissulaire humaine ; elle ne démontre pas une maladie parodontale destructrice ni une atteinte identique des artères. [53]
Une réanalyse publiée en 2022 d’un essai historique de cicatrisation apporte un autre élément. Les auteurs trouvent une résistance cicatricielle plus faible avec un apport moyen de 10 mg par jour qu’avec 80 mg. Des tissus préalablement déplétés ne retrouvaient pas nécessairement la résistance observée chez les participants mieux pourvus avec la réplétion étudiée. Cette réanalyse mérite attention parce qu’elle mesure une propriété mécanique. Elle ne correspond pas à un nouvel essai et ne permet pas d’extrapoler les résultats à la prévention des infarctus. [63]
La disponibilité locale dépend aussi de la maladie
Une concentration basse de vitamine C peut précéder une maladie, mais aussi en résulter. Cette seconde possibilité n’annule pas le rôle éventuel de la carence : une conséquence peut devenir un facteur aggravant. Il faut simplement démontrer cette boucle au lieu de la présumer.
Une étude du NIH publiée en 2022 a mesuré une fuite urinaire anormale de vitamine C chez 33 % des participants diabétiques, contre 9 % des témoins non diabétiques. Ces personnes éliminaient de la vitamine C alors que leur concentration plasmatique était assez basse pour que le rein la conserve normalement. Le résultat apporte une explication concrète à un statut bas qui ne dépendrait pas uniquement de l’alimentation. Il ne démontre pas encore que corriger cette fuite ou augmenter l’apport prévient les complications du diabète. [30]
Les travaux sur le transport cellulaire et les biopsies tissulaires invitent ainsi à raisonner sur la disponibilité réelle : apport, absorption, conservation rénale, entrée dans les cellules et consommation locale. Le rôle respectif de ces facteurs varie selon le contexte. Une concentration sanguine isolée ne décrit pas à elle seule tous les compartiments d’un organe. [25, 23]
Le lien avec les vaisseaux reçoit un soutien indépendant
En 2000, Maeda et ses collègues ont étudié des souris rendues incapables de synthétiser leur vitamine C. Sous apport marginal, ils ont observé des altérations de l’aorte : perturbation des lames élastiques, prolifération de cellules musculaires lisses et lésions focales de la surface endothéliale. Ce travail indépendant soutient directement le lien entre disponibilité de l’ascorbate et intégrité de la paroi vasculaire. Le régime finit aussi par entraîner des signes généraux de carence ; toutes les observations ne peuvent donc pas être attribuées à un état strictement sans symptômes. [42]
En 2002, Nakata et Maeda ont étudié des souris également prédisposées à l’athérosclérose. Le faible statut vitaminique ne faisait pas augmenter la taille des plaques dans leurs conditions expérimentales. Il réduisait en revanche leur contenu en collagène et augmentait leurs zones nécrotiques. Cela suggère que le déficit peut affecter la qualité et la stabilité potentielle d’une lésion, même sans accroître son volume. Une morphologie évoquant une vulnérabilité ne constitue toutefois pas une mesure de rupture ni d’infarctus. [43]
Les études de May et de ses collaborateurs complètent cette approche : l’ascorbate favorise le dépôt de collagène IV par des cellules endothéliales et améliore aussi leur fonction de barrière par des mécanismes rapides impliquant le monoxyde d’azote. Une meilleure étanchéité ne doit donc pas être automatiquement attribuée à une reconstruction de collagène. Plusieurs mécanismes peuvent coopérer. [44, 47]
Les cohortes humaines apportent des corrélations complémentaires. L’étude finlandaise de Nyyssönen relie une carence plasmatique à davantage d’infarctus ultérieurs ; EPIC-Norfolk relie un meilleur statut à une mortalité plus faible et à moins d’AVC. Ces résultats soutiennent l’intérêt du statut vitaminique comme indicateur de risque. Ils ne permettent pas d’isoler le rôle du collagène ni d’exclure l’influence de l’alimentation globale, du tabac ou d’une maladie préexistante. [55, 56, 58]
Le rôle réparateur proposé pour la Lp(a) reste une question distincte
Une étude de tissus humains lésés publiée en 1997 a retrouvé la Lp(a) avec la fibrine et la fibronectine dans des zones de réparation. Cette localisation est compatible avec une participation à la réponse tissulaire, mais ne prouve pas qu’elle intervient spécifiquement pour compenser un manque de vitamine C. Les souris transgéniques étudiées par Cha, Niedzwiecki et Rath en 2015 apportent un appui expérimental plus direct à certains éléments de leur modèle. Sa portée reste celle d’un modèle animal construit pour tester ce mécanisme. [40, 48]
Un résultat de 2017 ouvre une piste régulatrice : dans des cellules hépatiques HepG2, la vitamine C diminue l’expression de l’apo(a) par une voie impliquant TET2 et la régulation de l’ADN. Mais deux essais humains, avec 4,5 g par jour pendant douze semaines ou 1 g par jour pendant huit mois, n’ont pas montré de baisse significative de la Lp(a) circulante. L’effet cellulaire est donc une piste de recherche, pas une méthode clinique démontrée pour abaisser la Lp(a). Le taux sanguin et le dépôt tissulaire sont par ailleurs des critères différents. [49, 37, 41]
La régulation de la réparation possède désormais des appuis plus précis
Les fonctions épigénétiques de l’ascorbate permettent d’aller au-delà de l’idée d’un simple auxiliaire de fabrication. En 2022, Thaler et ses collègues ont montré, dans des modèles cellulaires et murins, que la vitamine C soutient le programme de différenciation des cellules osseuses via des modifications de l’ADN et des histones. Certaines actions sur l’expression des gènes étaient distinguables du dépôt de collagène lui-même. C’est un appui expérimental fort à une fonction de régulation de la reconstruction, sans démonstration clinique d’un traitement de l’ostéoporose. [18]
Les travaux de Pozzer et ses collègues, en 2017, relient plus directement disponibilité locale, collagène et réparation anormale. Dans un modèle de stress oxydatif du réticulum endoplasmique et de déficit en sélénoprotéine N, la consommation d’ascorbate augmente, le dépôt normal de collagène est perturbé et la signalisation TGF-β s’accentue. Certaines conditions associent raréfaction de la matrice normale et foyers fibreux. Ce modèle fournit un mécanisme possible à explorer ; sa dépendance à une anomalie génétique empêche de l’étendre tel quel à toutes les fibroses. [16]
Des publications de 2025 sur un épiderme humain reconstruit et de 2026 sur des cellules du trabéculum oculaire montrent aussi des effets sur des gènes de prolifération, de matrice et de remodelage. Elles renforcent la plausibilité d’actions tissulaires multiples. Elles ne mesurent pas la guérison de maladies cutanées ou du glaucome chez des patients. [19, 20]
Un autre mécanisme concerne la fin de l’inflammation. Chez des souris carencées, Vissers et Wilkie ont observé une mauvaise apoptose des neutrophiles et leur élimination insuffisante par les macrophages. Une inflammation moins bien résolue peut entretenir les agressions tissulaires : c’est un lien plausible entre manque d’ascorbate et réparation prolongée, distinct d’un défaut direct du collagène. [11]
Des organes montrent une progression et une récupération expérimentales
Dans une étude de 2022 chez des souris incapables de synthétiser leur vitamine C, la baisse de l’ascorbate musculaire précède une perte d’endurance, puis une diminution de la masse et de la force musculaires. La réplétion améliore ces paramètres. Ce modèle établit une succession temporelle et une réversibilité, mais utilise une privation complète ; il ne prouve pas que le mécanisme soit exclusivement collagénique. [31]
Dans le poumon, Koike et ses collègues ont comparé un apport minimal et un apport suffisant chez des souris exposées à la fumée. Après arrêt de cette exposition, le groupe suffisamment pourvu présente une meilleure restauration de certains paramètres pulmonaires, accompagnée de changements de synthèse du collagène. C’est un argument animal pour étudier la nutrition pendant la réparation. Ce résultat ne démontre pas la régénération des poumons de personnes atteintes de BPCO par supplémentation. [26]
Réparation efficace et fibrose ne sont pas synonymes
La matrice remplit plusieurs fonctions : soutien, transmission des contraintes, organisation des cellules et participation aux barrières. Une cicatrice peut restaurer la continuité d’un tissu tout en modifiant son fonctionnement. La question utile porte donc sur la qualité et la résolution de la réparation, pas uniquement sur la quantité de collagène produite.
L’ascorbate ne constitue pas un frein universel à la fibrose. Dans certaines cultures, il renforce la réponse des fibroblastes au TGF-β1 et leur transformation en myofibroblastes. À l’inverse, d’autres modèles relient son manque à une dérégulation des signaux de réparation. Ces résultats justifient une hypothèse dépendante du contexte : un apport adéquat peut soutenir la reconstruction normale, tandis que l’effet obtenu dépend aussi de l’état des cellules et des signaux qui les activent. [15, 16, 17]
Il reste notamment à vérifier si, dans un même organe, un manque modéré affecte différemment les membranes basales et les fibres de soutien. Les études disponibles ne démontrent pas une priorité générale donnée au collagène I au détriment du collagène IV.
Les essais de cicatrisation montrent un potentiel encore à préciser
Un petit essai randomisé publié en 2021, portant sur seize personnes ayant des ulcères du pied, a trouvé une amélioration de la cicatrisation sous vitamine C. La moitié des participants présentaient une carence ; le faible effectif et l’introduction d’une supplémentation chez les sujets carencés initialement sous placebo à partir de quatre semaines compliquent l’interprétation. [62]
En 2026, VITAFOOT a testé chez 99 personnes une association de vitamines C et A et de zinc pendant 28 jours. Malgré une carence en vitamine C chez près de la moitié des participants, l’essai n’a pas montré d’amélioration significative de son critère principal à douze semaines. Un signal précoce de fermeture des plaies était exploratoire. Ce résultat rappelle que la présence d’une carence ne garantit pas le succès de toute stratégie de supplémentation. Le protocole FOOT-C publié en 2026 doit tester plus spécifiquement la vitamine C ; une publication de protocole ne constitue pas encore un résultat. [66, 65]
Les essais cardiovasculaires de grande taille et les analyses génétiques ne démontrent pas non plus une prévention générale des événements par augmentation de la vitamine C. Ils limitent les promesses thérapeutiques, tout en laissant ouverte la question plus ciblée d’une correction chez des personnes présentant une insuffisance documentée et un défaut de réparation mesurable. [59, 57, 3]
Une hypothèse moderne et testable
L’ensemble de ces travaux permet de formuler une hypothèse plus précise : dans certains contextes, une disponibilité insuffisante en ascorbate peut devenir un facteur limitant de l’entretien tissulaire, en touchant la maturation du collagène, les barrières et les programmes de réparation. Une maladie peut à son tour diminuer cette disponibilité, créant une boucle d’aggravation possible. La fréquence et l’importance clinique de cette boucle restent à mesurer.
Pour la tester, il faudrait suivre des personnes dont le statut initial est documenté, mesurer la qualité de la matrice et une fonction du tissu, puis vérifier si une correction du déficit modifie ces deux niveaux. Des prélèvements répétés permettraient de distinguer variation passagère, déficit persistant et reconstitution effective. Les essais devraient préciser la durée, l’observance, l’inflammation, la fonction rénale et les soins associés ; une carence avérée nécessitant des soins ne devrait pas être laissée sans correction.
La piste est donc fondée sur une convergence réelle de mécanismes et d’observations. Sa valeur scientifique augmente lorsqu’on précise quel maillon est établi, dans quel modèle il l’est et ce qu’il reste à vérifier chez l’être humain. C’est ainsi que l’intuition du scorbut sous-clinique peut devenir un programme de recherche sur la capacité des tissus à s’entretenir et à se réparer.
Références du complément
- Levine M et al. (1996). Vitamin C pharmacokinetics in healthy volunteers: evidence for a recommended dietary allowance. Proceedings of the National Academy of Sciences 93 3704–3709.
- Yuan S et al. (2021 avec indexation PubMed en 2022). Genetically predicted circulating vitamin C in relation to cardiovascular disease. European Journal of Preventive Cardiology 28 1829–1837.
- Murad et al. (1981). Regulation of collagen synthesis by ascorbic acid. Proceedings of the National Academy of Sciences USA.
- Bienkowski (1984). Collagen degradation in human lung fibroblasts: extent of degradation, role of lysosomal proteases, and evaluation of an alternate hypothesis. Journal of Cellular Physiology.
- Hevia, Omaye et Jacob (1990). Urinary hydroxyproline excretion and vitamin C status in healthy young men. The American Journal of Clinical Nutrition.
- Vissers et Wilkie (2007). Ascorbate deficiency results in impaired neutrophil apoptosis and clearance and is associated with up-regulation of hypoxia-inducible factor 1alpha. Journal of Leukocyte Biology.
- Kishimoto et al. (2013). Ascorbic acid enhances the expression of type 1 and type 4 collagen and SVCT2 in cultured human skin fibroblasts. Biochemical and Biophysical Research Communications.
- Piersma B et al. (2017). Ascorbic acid promotes a TGFβ1-induced myofibroblast phenotype switch. Physiological Reports 5 e13324.
- Pozzer et al. (2017). Endoplasmic Reticulum Oxidative Stress Triggers Tgf-Beta-Dependent Muscle Dysfunction by Accelerating Ascorbic Acid Turnover. Scientific Reports.
- Liu et al. (2019). Reversal of TET-mediated 5-hmC loss in hypoxic fibroblasts by ascorbic acid. Laboratory Investigation.
- Thaler et al. (2022). Vitamin C epigenetically controls osteogenesis and bone mineralization. Nature Communications.
- Sato et al. (2025). Vitamin C Promotes Epidermal Proliferation by Promoting DNA Demethylation of Proliferation-Related Genes in Human Epidermal Equivalents. Journal of Investigative Dermatology.
- Holden et al. (2026). Effects of ascorbic acid on trabecular meshwork gene expression and collagen secretion. BMJ Open Ophthalmology.
- Tsuchiya H, Bates CJ (2003). Comparison of vitamin C deficiency with food restriction on collagen cross-link ratios in bone, urine and skin of weanling guinea-pigs. British Journal of Nutrition.
- Harrison FE, Dawes SM, Meredith ME, Babaev VR, Li L, May JM (2010). Low vitamin C and increased oxidative stress and cell death in mice that lack the sodium-dependent vitamin C transporter SVCT2. Free Radical Biology and Medicine.
- Carr AC, Bozonet SM, Pullar JM, Simcock JW, Vissers MCM (2013). Human skeletal muscle ascorbate is highly responsive to changes in vitamin C intake and plasma concentrations. The American Journal of Clinical Nutrition.
- Koike K et al. (2014). Vitamin C prevents cigarette smoke-induced pulmonary emphysema in mice and provides pulmonary restoration. American Journal of Respiratory Cell and Molecular Biology.
- Ebenuwa I et al. (2022). Abnormal urinary loss of vitamin C in diabetes: prevalence and clinical characteristics of a vitamin C renal leak. The American Journal of Clinical Nutrition.
- Takisawa S, Takino Y, Lee J, Machida S, Ishigami A (2022). Vitamin C Is Essential for the Maintenance of Skeletal Muscle Functions. Biology.
- Bostom AG et al. (1995). The effect of high-dose ascorbate supplementation on plasma lipoprotein(a) levels in patients with premature coronary heart disease. Pharmacotherapy.
- Yano Y et al. (1997). Immunolocalization of lipoprotein(a) in wounded tissues. Journal of Histochemistry & Cytochemistry.
- Jenner JL et al. (2000). Ascorbic acid supplementation does not lower plasma lipoprotein(a) concentrations. Atherosclerosis.
- Maeda N et al. (2000). Aortic wall damage in mice unable to synthesize ascorbic acid. Proceedings of the National Academy of Sciences.
- Nakata Y, Maeda N (2002). Vulnerable atherosclerotic plaque morphology in apolipoprotein E-deficient mice unable to make ascorbic acid. Circulation.
- May JM, Qu ZC (2005). Transport and intracellular accumulation of vitamin C in endothelial cells: relevance to collagen synthesis. Archives of Biochemistry and Biophysics.
- May JM, Qu ZC (2011). Nitric oxide mediates tightening of the endothelial barrier by ascorbic acid. Biochemical and Biophysical Research Communications.
- Cha J et al. (2015). Hypoascorbemia induces atherosclerosis and vascular deposition of lipoprotein(a) in transgenic mice. American Journal of Cardiovascular Disease.
- Qu K et al. (2017). Vitamin C down-regulate apo(a) expression via Tet2-dependent DNA demethylation in HepG2 cells. International Journal of Biological Macromolecules.
- Leggott PJ et al. (1991). Effects of ascorbic acid depletion and supplementation on periodontal health and subgingival microflora in humans. Journal of Dental Research 70(12):1531–1536.
- Nyyssönen K et al. (1997). Vitamin C deficiency and risk of myocardial infarction: prospective population study of men from eastern Finland. BMJ 314:634–638.
- Khaw KT et al. (2001). Relation between plasma ascorbic acid and mortality in men and women in EPIC-Norfolk prospective study: a prospective population study. Lancet 357:657–663.
- Cook NR et al. (2007). A randomized factorial trial of vitamins C and E and beta carotene in the secondary prevention of cardiovascular events in women: results from the…. Archives of Internal Medicine 167(15):1610–1618.
- Myint PK et al. (2008). Plasma vitamin C concentrations predict risk of incident stroke over 10 y in 20 649 participants of the European Prospective Investigation into Cancer Norfolk…. American Journal of Clinical Nutrition 87(1):64–69.
- Sesso HD et al. (2008). Vitamins E and C in the prevention of cardiovascular disease in men: the Physicians’ Health Study II randomized controlled trial. JAMA 300(18):2123–2133.
- Gunton JE et al. (2021 (en ligne 2020)). Vitamin C improves healing of foot ulcers: a randomised, double-blind, placebo-controlled trial. British Journal of Nutrition 126(10):1451–1458.
- Hujoel PP, Hujoel MLA (2022 (en ligne 2021)). Vitamin C and scar strength: analysis of a historical trial and implications for collagen-related pathologies. American Journal of Clinical Nutrition 115(1):8–17.
- Kaminski MR et al. (2026). Efficacy of Vitamin C Treatment to Aid the Healing of Foot Ulcers in People With Diabetes: A Randomised, Placebo-Controlled Double-Blind Trial: The FOOT-C Study Protocol. Journal of Foot and Ankle Research 19(3):e70193.
- Nixon J et al. (2026). VITAFOOT: A Double-Blind, Randomized Controlled Pilot Trial of Combined Vitamin C, Vitamin A, and Zinc Supplementation in People With Nonhealing Diabetes-Related Foot Ulcers. Diabetes, Obesity, and CardioMetabolic CARE 1(4):609–617.
- Pullar JM et al. (2026 (en ligne 2025)). Improved Human Skin Vitamin C Levels and Skin Function after Dietary Intake of Kiwifruit: A High-Vitamin-C Food. Journal of Investigative Dermatology 146(5):1408–1411.e7.