L’expression « scorbut sous-clinique » désigne ici une hypothèse : un apport en vitamine C pourrait suffire à éviter le scorbut manifeste, tout en restant insuffisant pour assurer durablement certaines fonctions d’entretien et de réparation des tissus. Selon cette conception somme toute logique, les conséquences d’un manque chronique se développeraient progressivement, avant l’apparition des signes caractéristiques d’une carence sévère. C’est du bon sens qui a démarré cette théorie, puisqu’il est simple à comprendre que la mort par scorbut est une progression vers la dislocation immédiate fatale des tissus biologiques, qui évidemment n’arrive pas du jour au lendemain, mais se développe sur plusieurs semaines au mois, et cause des problèmes en amont de la phase finale.
Cette idée s’inscrit notamment dans les travaux d’Irwin Stone, qui propose dès1966 le concept d’« hypo-ascorbémie ». Son point de départ est une particularité biologique réelle : contrairement à la plupart des mammifères, l’être humain ne synthétise pas sa propre vitamine C et dépend de ses apports alimentaires. Stone envisage alors le scorbut comme l’expression extrême d’une insuffisance dont les effets pourraient commencer bien plus tôt.
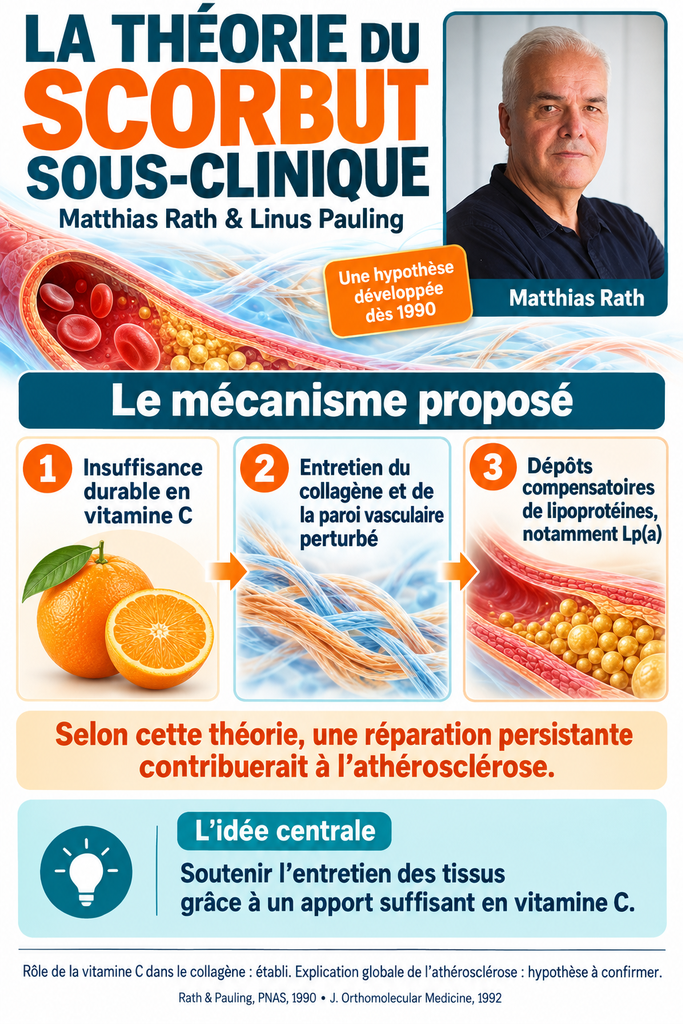
Au début des années 1990, Linus Pauling et Matthias Rath développent une application cardiovasculaire de cette idée. Ils proposent qu’une insuffisance chronique d’ascorbate fragilise le collagène et la paroi des vaisseaux. Selon leur modèle, des dépôts de lipoprotéine(a) et de fibrine contribueraient à consolider cette paroi fragilisée, mais leur accumulation participerait ensuite à la formation des plaques d’athérosclérose. Leur hypothèse publiée en 1990 est prolongée en 1992 par une « théorie unifiée » des maladies cardiovasculaires.
Cette théorie s’appuie sur des fonctions établies de la vitamine C : elle participe à la maturation du collagène, au fonctionnement de l’endothélium et à plusieurs mécanismes de régulation cellulaire. Cette page explore donc ses fondements, les observations qui l’éclairent et ses limites, en distinguant le rôle indispensable de l’ascorbate des explications plus générales proposées par ses défenseurs.
Matthias Rath a développé, avec Linus Pauling, une hypothèse qui place l’insuffisance chronique en vitamine C au cœur des maladies cardiovasculaires. Ses travaux associent une réalité biochimique bien établie — le rôle de l’ascorbate dans le maintien des tissus — à une proposition beaucoup plus large : une partie de l’athérosclérose est une réponse de réparation à une fragilisation nutritionnelle de la paroi artérielle. Pour présenter fidèlement cette approche, il faut distinguer ses publications expérimentales, ses propositions théoriques et leur diffusion auprès du public.
La naissance de l’hypothèse Rath–Pauling
Le point de départ est le scorbut : une carence importante en vitamine C perturbe la maturation du collagène et fragilise notamment les petits vaisseaux. Rath et Pauling proposent de prolonger ce raisonnement : une insuffisance moins sévère, mais durable, pourrait provoquer des lésions discrètes de la paroi vasculaire, avant d’entraîner les manifestations classiques du scorbut.
En août 1990, ils publient dans les Proceedings of the National Academy of Sciences l’article Hypothesis: lipoprotein(a) is a surrogate for ascorbate. Leur proposition concerne particulièrement la lipoprotéine(a), ou Lp(a). Selon leur modèle, celle-ci contribue à renforcer ou à colmater une paroi fragilisée lorsque l’ascorbate manque. Son accumulation devient toutefois défavorable en participant aux dépôts athéroscléreux. Le titre original présente explicitement cette interprétation comme une hypothèse. pubmed.ncbi.nlm.nih.gov
Dans ce raisonnement, la vitamine C entretient les structures de soutien de la paroi, tandis que la Lp(a) intervient comme un mécanisme compensatoire proposé. Il ne s’agit donc pas simplement de considérer le cholestérol comme un matériau indésirable : Rath et Pauling cherchent à expliquer pourquoi certaines lipoprotéines s’accumulent dans les artères.
Les principales étapes de ses publications
En décembre 1990, Rath et Pauling publient une étude chez le cobaye, animal dépendant, comme l’être humain, d’un apport alimentaire en vitamine C : Immunological evidence for the accumulation of lipoprotein(a) in the atherosclerotic lesion of the hypoascorbemic guinea pig. Ils rapportent des lésions artérielles lors de la restriction en ascorbate et des résultats immunologiques qu’ils interprètent comme une accumulation de Lp(a). Un apport suffisant en vitamine C prévient les lésions dans leur modèle. Cette expérience apportait déjà un argument animal indiscutable à leur proposition.
En 1991, puis en 1992, ils développent leur interprétation dans le Journal of Orthomolecular Medicine. Les titres annoncent une ambition considérable : Solution to the Puzzle of Human Cardiovascular Disease, puis A Unified Theory of Human Cardiovascular Disease Leading the Way to the Abolition of This Disease as a Cause for Human Mortality. Ils présentent l’insuffisance en ascorbate comme une cause première de fragilisation vasculaire, suivie de dépôts de lipoprotéines et de fibrine. www.dr-rath-foundation.org
Un autre article de 1992, Plasmin-Induced Proteolysis and the Role of Apoprotein(a), Lysine, and Synthetic Lysine Analogs, étend leur réflexion à la dégradation des tissus. L’approche associe alors deux objectifs : favoriser l’entretien de la matrice extracellulaire et limiter certains mécanismes de sa destruction. La lysine prend une place importante dans leurs propositions. Dr. Rath Research Institute
En 1996, Rath et Aleksandra Niedzwiecki publient Nutritional Supplement Program Halts Progression of Early Coronary Atherosclerosis Documented by Ultrafast Computed Tomography, dans le Journal of Applied Nutrition. L’étude suit 55 personnes recevant pendant un an une association de vitamines, minéraux et acides aminés. Les auteurs rapportent un ralentissement de la progression des calcifications coronaires, particulièrement dans les atteintes débutantes.
En 2015, John Cha, Niedzwiecki et Rath publient Hypoascorbemia induces atherosclerosis and vascular deposition of lipoprotein(a) in transgenic mice, dans l’American Journal of Cardiovascular Disease. Ils utilisent des souris génétiquement modifiées pour produire une Lp(a) humaine et ne plus fabriquer leur propre vitamine C. Les résultats relient une insuffisance en ascorbate aux dépôts vasculaires dans ce modèle. C’est une nouvelle expérimentation démontrant directement leur hypothèse.
La création de l’institut et l’élargissement des recherches
Selon la chronologie publiée par Rath, le Dr. Rath Research Institute est fondé en Californie en 1999, avec Aleksandra Niedzwiecki à sa direction. Ses recherches portent progressivement sur des associations de micronutriments : vitamine C, lysine, proline et autres substances, étudiées notamment pour leurs effets sur la matrice extracellulaire, l’invasion cellulaire et différents modèles de maladies. Une partie importante de ces travaux relève de cultures cellulaires et d’expérimentations animales. Dr. Rath Health Foundation
La Dr. Rath Health Foundation, créée en 2002, est une structure distincte, consacrée notamment à la diffusion de ses idées et à l’éducation sanitaire. Elle indique être financée par les bénéfices du groupe Rath, qui commercialise des compléments alimentaires. Dr. Rath Health Foundation
Les livres et leur diffusion
Rath présente ses idées au grand public dans Eradicating Heart Disease, publié en 1993, puis dans Why Animals Don’t Get Heart Attacks… But People Do!, dont une édition de 2003 est répertoriée dans les catalogues bibliographiques. En 2011, il publie avec Niedzwiecki Victory Over Cancer!, qui étend au cancer leur approche nutritionnelle des tissus et de leur dégradation. Dr. Rath Health Foundation
Ces ouvrages ont bénéficié d’une diffusion internationale et de nombreuses traductions, et le réseau éditorial de Rath revendique des millions de lecteurs. Dr. Rath Books
Quels chercheurs soutiennent cette approche ?
Le soutien scientifique direct le plus important est Linus Pauling, coauteur des textes fondateurs. Aleksandra Niedzwiecki joue ensuite un rôle central dans le développement du programme expérimental. John Cha, ainsi que Mohd Waheed Roomi et Tatiana Kalinovsky, participent à différentes publications de l’équipe, notamment sur les associations de nutriments et la matrice extracellulaire. PubMed
D’autres chercheurs apportent des éléments compatibles avec certaines de ses prémisses. Dès 1973, Emil Ginter étudie chez le cobaye le rôle de la vitamine C dans la transformation du cholestérol en acides biliaires. Ces travaux antérieurs montrent des interactions entre statut vitaminique et métabolisme lipidique. PubMed
James M. May et Fiona E. Harrison, dans leur synthèse de 2013, décrivent les fonctions de l’ascorbate dans l’endothélium : soutien du collagène, protection contre l’oxydation et maintien de la fonction de barrière. Leurs recherches confortent l’importance vasculaire de la vitamine C. pubmed.ncbi.nlm.nih.gov
Rath et Pauling : la théorie du scorbut sous-clinique
La théorie du scorbut sous-clinique propose de regarder les maladies cardiovasculaires à partir d’une question fondamentale : que devient la paroi des vaisseaux lorsque l’organisme manque durablement des ressources nécessaires à son entretien ?
Au début des années 1990, Matthias Rath et Linus Pauling développent ensemble une explication qui relie vitamine C, collagène, intégrité vasculaire et dépôts de lipoprotéines. Leur raisonnement déplace l’attention vers l’état du tissu dans lequel les dépôts apparaissent. Ils cherchent à comprendre pourquoi une paroi artérielle devient vulnérable et comment les mécanismes destinés à la protéger pourraient, avec le temps, participer à la maladie. Leur première publication commune consacrée à cette hypothèse paraît en 1990 dans les Proceedings of the National Academy of Sciences.
Du scorbut manifeste à l’insuffisance chronique
La vitamine C intervient dans la maturation du collagène, une famille de protéines essentielles à l’organisation et à la résistance des tissus. Elle contribue également au fonctionnement des cellules endothéliales, qui tapissent l’intérieur des vaisseaux. Une carence profonde provoque le scorbut, avec notamment une fragilité des tissus et des saignements.
Rath et Pauling posent alors une question : entre une alimentation suffisante et le scorbut manifeste, une insuffisance prolongée pourrait-elle affaiblir progressivement la paroi vasculaire ?
Dans leur article de 1992, ils proposent que certaines maladies cardiovasculaires correspondent à un état de « pré-scorbut ». L’apport en vitamine C permettrait de survivre sans scorbut aigu, tout en restant insuffisant pour assurer durablement l’intégrité vasculaire. Selon ce modèle, la fragilisation du tissu conjonctif et l’altération de la barrière endothéliale déclencheraient des réponses compensatoires.
La lipoprotéine(a), au centre de leur proposition
En août 1990, Rath et Pauling publient Hypothesis: lipoprotein(a) is a surrogate for ascorbate. Ils y attribuent un rôle particulier à la lipoprotéine(a), appelée Lp(a), une particule transportant des lipides et comportant une protéine supplémentaire, l’apolipoprotéine(a).
Ils proposent que cette particule puisse contribuer à stabiliser les tissus lorsque l’ascorbate fait défaut. Elle agirait comme un matériau compensatoire dans une paroi fragilisée. Cette fonction proposée ne signifie pas que la Lp(a) remplace les fonctions biochimiques de la vitamine C : elle participerait à une réponse de protection face aux conséquences de son insuffisance.
Dans leur interprétation, une réponse initialement protectrice peut devenir dommageable si la fragilité persiste. Les dépôts se poursuivent et contribuent à épaissir la paroi. L’athérosclérose serait ainsi, pour une part majeure selon les auteurs, la conséquence d’une réparation compensatoire entretenue par un déficit nutritionnel non corrigé. C’est le cœur de leur « théorie unifiée » publiée en 1992.
Les expériences qui ont nourri cette théorie
En décembre 1990, Rath et Pauling publient une étude chez le cobaye, qui dépend d’un apport alimentaire en vitamine C. Ils rapportent que la restriction en ascorbate favorise des lésions artérielles et décrivent des observations immunologiques qu’ils interprètent comme une accumulation de Lp(a) dans ces lésions. Un apport suffisant en vitamine C prévient leur apparition dans les conditions de l’expérience.
Cette publication, Immunological evidence for the accumulation of lipoprotein(a) in the atherosclerotic lesion of the hypoascorbemic guinea pig, constitue un appui expérimental initial à leur raisonnement : modifier l’apport en ascorbate peut modifier l’état de la paroi artérielle dans un modèle animal.
En 1996, Matthias Rath et Aleksandra Niedzwiecki publient une étude menée auprès de 55 personnes, suivies par imagerie des calcifications coronaires. Leur programme associe plusieurs vitamines, minéraux et acides aminés. Les auteurs rapportent un ralentissement de la progression des calcifications, particulièrement dans les atteintes débutantes. Cette étude exploratoire examine une association nutritionnelle, avec une comparaison avant et après supplémentation ; elle ne permet donc pas d’isoler la contribution de chaque nutriment.
En 2015, John Cha, Aleksandra Niedzwiecki et Matthias Rath poursuivent l’étude du mécanisme dans un modèle spécialement conçu : des souris produisant une Lp(a) humaine et incapables de synthétiser leur propre vitamine C. Leur publication, Hypoascorbemia induces atherosclerosis and vascular deposition of lipoprotein(a) in transgenic mice, rapporte des dépôts vasculaires et des lésions associés à l’insuffisance en ascorbate. Ce modèle permet d’étudier conjointement deux caractéristiques importantes pour leur hypothèse : la dépendance alimentaire à la vitamine C et la présence de Lp(a).
Pourquoi associer vitamine C et acides aminés ?
L’approche développée par Rath et Pauling s’intéresse à la fois à la construction des tissus et aux mécanismes de leur dégradation.
La vitamine C participe au fonctionnement des enzymes nécessaires à la maturation du collagène. La lysine et la proline sont des acides aminés présents dans sa structure. Leurs propositions associent donc le soutien des processus de construction à une action recherchée sur les interactions moléculaires impliquées dans les dépôts et la destruction de la matrice.
Leur article de 1992, Plasmin-Induced Proteolysis and the Role of Apoprotein(a), Lysine, and Synthetic Lysine Analogs, explore notamment les relations entre apolipoprotéine(a), lysine et dégradation des protéines. Il annonce l’élargissement ultérieur des recherches de Rath aux mécanismes de maintien de la matrice extracellulaire.
Des recherches indépendantes éclairent plusieurs éléments du raisonnement
Les travaux sur la vitamine C et les vaisseaux dépassent largement l’équipe de Rath.
En 2013, James M. May et Fiona E. Harrison, de l’université Vanderbilt, publient une synthèse consacrée au rôle de l’ascorbate dans l’endothélium. Ils décrivent notamment son intervention dans la synthèse et le dépôt du collagène IV, constituant des membranes basales, ainsi que ses effets sur la survie des cellules endothéliales, le stress oxydant et la disponibilité du monoxyde d’azote, qui participe à la dilatation vasculaire. Ces recherches apportent un contenu biologique précis à l’idée que la vitamine C contribue à l’entretien de la paroi.
En 2014, Ammar Ashor, Jose Lara, John Mathers et Mario Siervo réunissent les résultats de 44 essais cliniques randomisés dans une méta-analyse publiée dans Atherosclerosis. Ils constatent une amélioration globale de la fonction endothéliale sous vitamine C, avec des effets particulièrement présents chez des personnes atteintes d’athérosclérose, de diabète ou d’insuffisance cardiaque. Il s’agit ici d’un résultat humain sur le fonctionnement des vaisseaux, distinct d’une mesure de disparition des plaques ou de réduction des infarctus. Publication et résumé.
Ces chercheurs documentent des mécanismes et des effets compatibles avec certains éléments du raisonnement Rath–Pauling. Cela permet de relier leurs recherches, tout en attribuant à chacun les conclusions qu’il a effectivement formulées.
L’institut, les collaborateurs et les livres
Selon la chronologie publiée par Rath, le Dr. Rath Research Institute est créé en Californie en 1999, sous la direction scientifique d’Aleksandra Niedzwiecki. Les recherches s’étendent aux associations de micronutriments et à leurs effets sur les cellules et la matrice extracellulaire. John Cha, Mohd Waheed Roomi et Tatiana Kalinovsky figurent parmi les collaborateurs de différentes publications de ce programme. La Dr. Rath Health Foundation, créée en 2002, contribue à sa diffusion auprès du public.
Cette diffusion passe aussi par les livres. Eradicating Heart Disease paraît en 1993, suivi par les éditions de Why Animals Don’t Get Heart Attacks… But People Do!. Rath et Niedzwiecki publient ensuite Victory Over Cancer! en 2011. Les traductions témoignent d’une diffusion internationale ; leur réseau éditorial revendique des millions de lecteurs, sans qu’un chiffre de ventes indépendant ait pu être vérifié dans les sources consultées.
Une proposition qui ouvre des questions de recherche précises
L’intérêt de cette théorie est de placer l’entretien des tissus au premier plan : leur résistance, leur renouvellement et la capacité des cellules à réparer les dommages. Elle invite à examiner si un statut insuffisant en vitamine C peut entretenir certaines conditions favorisant les lésions vasculaires.
Il reste à déterminer dans quelles populations, à quels niveaux d’insuffisance et à quels stades de maladie ce mécanisme joue un rôle déterminant. Les bénéfices sur la fonction endothéliale et les résultats animaux ne suffisent pas à établir l’ensemble de la théorie ; de grands essais de supplémentation ont aussi donné des résultats nuls sur les événements cardiovasculaires.
Pour prolonger ce travail, une question mérite une attention particulière : comment la disponibilité de l’ascorbate influence-t-elle l’équilibre entre entretien normal de la matrice, réparation efficace et cicatrisation persistante ? Cette question permet d’examiner les différents collagènes, les membranes basales et les cellules réparatrices sans présumer à l’avance du mécanisme. Elle transforme l’intuition d’un lien entre nutrition et fragilité des tissus en un programme de recherche concret.
Vitamine C, collagène et cicatrisation : comprendre la réparation des tissus et leur rigidification
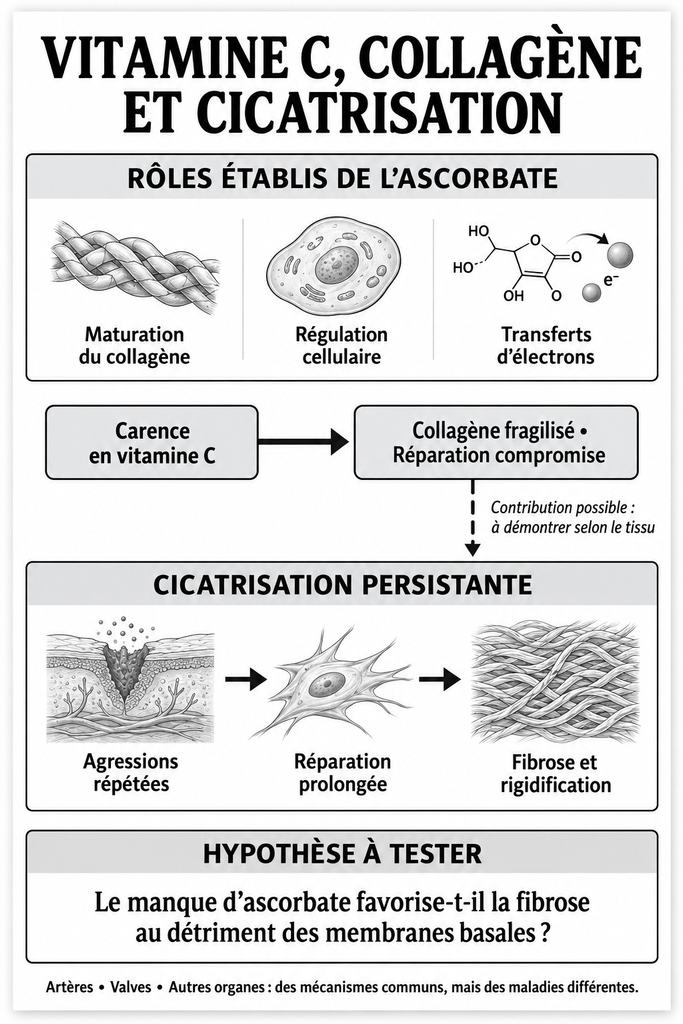
Nos tissus se renouvellent continuellement. Dans les artères, les valves cardiaques, les poumons ou les reins, les cellules entretiennent une structure de soutien appelée matrice extracellulaire. Cette matrice contient différents collagènes, de l’élastine et d’autres molécules qui assurent résistance, souplesse et échanges. La santé d’un organe dépend de leur quantité, mais aussi de leur emplacement, de leur organisation et de leur renouvellement. Une question se pose alors : un manque de vitamine C pourrait-il perturber cet entretien et favoriser une réparation imparfaite, conduisant progressivement à la fibrose et à la rigidification ? Plusieurs mécanismes rendent cette hypothèse plausible, sans établir qu’elle explique toutes ces maladies.
La vitamine C, principalement présente sous forme d’ascorbate dans l’organisme, intervient à plusieurs niveaux. Elle aide à produire un collagène correctement constitué, participe à la protection des cellules et influence certains mécanismes de régulation des gènes. Il serait donc réducteur de la considérer seulement comme un ingrédient de fabrication. Mais affirmer que son rôle serait « surtout régulateur » dépasserait également les connaissances disponibles. Ses fonctions de maturation, de protection et de régulation sont liées ; leur importance relative dépend du tissu et de son état.
Pour comprendre cette relation, il faut d’abord distinguer les collagènes. Les types I et III forment des fibres qui contribuent à la résistance des tissus. Le type IV constitue des réseaux fins dans les membranes basales, notamment sous les cellules endothéliales qui tapissent les vaisseaux. Ces réseaux soutiennent les cellules et participent à l’organisation des barrières. Il n’existe donc pas un collagène utile et un autre intrinsèquement pathologique : les collagènes présents dans les fibroses sont aussi nécessaires au fonctionnement normal. C’est leur accumulation, leur disposition et le contexte biologique qui peuvent devenir problématiques.
Le corps fabrique ses propres collagènes à partir d’acides aminés, selon les instructions de gènes différents. Le collagène alimentaire est digéré ; il apporte des acides aminés et de petits peptides, dont certains peuvent passer dans le sang. Il n’est pas transporté intact jusqu’à une valve pour remplacer directement une fibre abîmée. La cellule doit assembler ses protéines, les modifier, les exporter et organiser leur dépôt dans le tissu. L’alimentation fournit ainsi des ressources, tandis que les cellules locales réalisent et contrôlent la construction.
Une blessure déclenche un programme de réparation. Dans une plaie cutanée, la coagulation contribue d’abord à arrêter le saignement, puis les cellules immunitaires éliminent les microbes et les débris. Des signaux attirent et activent les cellules réparatrices. Les fibroblastes produisent une matrice provisoire ; certains deviennent des myofibroblastes, capables de fabriquer de la matrice et de contracter la plaie. La réparation associe donc nettoyage, reconstruction, contraction et réorganisation. Dans les organes internes, les modalités diffèrent, mais plusieurs de ces mécanismes sont communs.
Lorsque la réparation se déroule correctement, son intensité diminue après la fermeture de la lésion. Une partie des cellules activées disparaît ou change d’état, et la matrice déposée est remodelée. Dans la peau, notamment, la composition et l’organisation des collagènes évoluent pendant la maturation de la cicatrice. Le tissu récupère de la résistance, sans toujours retrouver exactement son architecture initiale. Une cicatrice représente ainsi une solution biologique efficace pour restaurer la continuité d’un tissu, mais elle peut rester moins souple ou moins fonctionnelle que ce qu’elle remplace.
La fibrose apparaît lorsque la production et la persistance de matrice deviennent excessives. Des agressions répétées, une inflammation durable ou des signaux de réparation mal interrompus peuvent maintenir les cellules dans un état producteur de fibres. La matrice s’accumule, se réorganise et se rigidifie. Cette rigidité peut à son tour stimuler les fibroblastes : ceux-ci perçoivent les contraintes mécaniques et activent des programmes qui entretiennent la fibrose. Des expériences ont identifié les relais YAP et TAZ dans cette boucle. La fibrose est donc un processus biologique actif, qui peut s’autoentretenir.
L’ascorbate intervient d’abord dans la qualité du collagène nouvellement fabriqué. Certaines enzymes modifient les acides aminés proline et lysine, permettant une maturation adaptée de la protéine. L’ascorbate contribue à maintenir leur fonctionnement. Une carence importante compromet l’intégrité des tissus, comme l’illustre le scorbut. Dans des fibroblastes pulmonaires humains en culture, le manque d’ascorbate augmente la dégradation intracellulaire du collagène insuffisamment modifié et réduit la production de collagènes I et III. La pénurie affecte donc aussi les fibres résistantes, pas seulement les membranes basales.
Cette fonction repose notamment sur des transferts d’électrons. L’ascorbate est un agent réducteur : il peut céder un électron à une cible chimique. Dans certaines enzymes de maturation du collagène, cela permet de ramener le fer oxydé vers un état compatible avec l’activité enzymatique. Il ne s’agit pas d’un courant électrique parcourant la plaie, mais de réactions moléculaires précises. Cette capacité explique une partie du lien entre vitamine C et réparation. Elle ne signifie toutefois pas que tout trouble de cicatrisation résulte d’un manque général d’électrons.
L’oxydation elle-même possède une double fonction. Un excès de réactions oxydantes peut endommager les structures cellulaires, mais certaines molécules oxydantes servent aussi de messages. Chez le poisson-zèbre, une blessure provoque un gradient local de peroxyde d’hydrogène qui contribue à attirer les cellules immunitaires. Le fonctionnement normal repose donc sur une régulation de ces signaux, dans l’espace et dans le temps. La cicatrisation n’exige pas de supprimer toute oxydation : elle nécessite une réponse proportionnée, suivie de sa résolution.
Le rôle régulateur de l’ascorbate est également documenté. Dans des cellules de tendon aviaire, son ajout augmente la transcription d’un gène du collagène I et prolonge la durée de vie de son ARN messager. Cet ARN constitue l’instruction temporaire utilisée pour produire la protéine. D’autres expériences montrent que l’ascorbate influence différemment les messages correspondant au collagène et à l’élastine. Il peut donc agir sur les quantités que les cellules sont programmées pour fabriquer, au-delà de son rôle dans la maturation des protéines déjà produites. Ces observations proviennent de modèles cellulaires.
L’ascorbate participe aussi à des mécanismes épigénétiques, qui modifient l’activité des gènes sans changer leur séquence. Il soutient notamment les enzymes TET, impliquées dans la modification de marques chimiques de l’ADN. Une étude de cicatrices humaines, complétée par des expériences sur fibroblastes, a montré qu’il pouvait corriger partiellement certaines modifications associées à un modèle de manque d’oxygène. Il intervient également dans le contrôle du système HIF, qui organise la réponse cellulaire à l’oxygène disponible. Ces résultats montrent des possibilités de régulation ; ils ne prouvent pas une restauration des valves ou des organes fibrosés chez l’humain.
Une observation empêche cependant d’assimiler l’ascorbate à un simple frein de la fibrose. En présence du signal TGF-β1, il peut renforcer la transformation de fibroblastes humains en myofibroblastes et stimuler l’expression de gènes de la matrice, notamment ceux de collagènes I et IV. Les cellules engagées dans une réparation fibreuse utilisent elles aussi la vitamine C. Son effet dépend donc du programme cellulaire en cours. Ces résultats en culture ne démontrent pas qu’une supplémentation provoque une fibrose ; ils montrent pourquoi « davantage d’ascorbate » ne signifie pas automatiquement « moins de fibres ».
L’hypothèse discutée ici est plus précise : en situation d’ascorbate insuffisant, certains tissus privilégieraient-ils une consolidation fibreuse au détriment de la restauration de leurs membranes basales ? L’image d’un bâtiment aide à comprendre cette possibilité : préserver sa tenue pourrait devenir prioritaire sur la restitution de toutes ses fonctions. Mais le collagène IV n’est pas une simple finition comparable à une peinture. Il constitue lui aussi une structure essentielle. L’analogie suggère une question de recherche ; elle ne démontre ni une décision de l’organisme ni une redistribution effective de la vitamine C.
Pour vérifier cette hypothèse, il faudrait montrer, dans un même tissu, qu’une diminution de l’ascorbate affecte préférentiellement le réseau IV tout en préservant ou stimulant les fibres I. Il faudrait mesurer les protéines réellement déposées, leur organisation, leur dégradation et le fonctionnement du tissu, puis examiner ce qui se passe lorsque l’ascorbate est rétabli. La présence simultanée de moins de collagène IV et de davantage de fibres ne suffit pas : des populations cellulaires différentes, des signaux inflammatoires ou une dégradation sélective peuvent produire cette situation. À ce stade, la priorité nutritionnelle proposée reste une hypothèse.
Dans les artères, cette réflexion rejoint en partie la théorie développée par Rath et Pauling. Ils ont proposé qu’une insuffisance chronique d’ascorbate fragilise la paroi et favorise des dépôts compensatoires, notamment de lipoprotéine(a), contribuant ensuite à l’athérosclérose. Leur article de 1990 présentait explicitement cette proposition comme une hypothèse. Elle met l’accent sur la solidité de la paroi et les mécanismes de réparation. Elle ne permet cependant pas de considérer toute plaque comme un simple pansement, ni d’attribuer l’ensemble de l’athérosclérose à une carence en vitamine C.
Un résultat expérimental apporte ici une nuance majeure. Chez des souris génétiquement prédisposées à l’athérosclérose et incapables de synthétiser leur vitamine C, une carence chronique n’a pas augmenté l’initiation ou la progression des plaques dans les conditions étudiées. Elle a en revanche fortement diminué leur dépôt de collagène, donnant une morphologie potentiellement plus vulnérable à la rupture. Le collagène peut donc aussi consolider une plaque. Cette étude animale soutient l’importance de l’ascorbate pour la structure vasculaire, tout en contestant une chaîne simple selon laquelle son manque provoquerait nécessairement davantage de fibrose et de plaques.
Dans la valve aortique, la maladie calcifiante associe perturbations endothéliales, accumulation de lipides, inflammation et transformation des cellules locales. Certaines produisent davantage de matrice ; d’autres adoptent des caractéristiques favorisant la minéralisation. Les feuillets s’épaississent et s’ouvrent moins bien. Fibrose et calcification peuvent coopérer, mais elles restent deux phénomènes distincts. Une insuffisance d’ascorbate pourrait modifier certains de ces mécanismes ; les données examinées ne démontrent pas qu’elle en soit habituellement le déclencheur chez l’humain. Les contraintes du flux sanguin et de la pression participent elles aussi directement au remodelage.
La valve mitrale illustre une autre évolution possible. Dans certaines dégénérescences, les fibres se désorganisent et les feuillets deviennent trop déformables pour fermer correctement. Des valves humaines montrent une diminution de la densité du collagène I, accompagnée d’une augmentation du collagène III et des protéoglycanes. Le tissu peut donc devenir plus épais tout en perdant sa tenue mécanique. Cette observation rappelle que les maladies valvulaires ne suivent pas toutes un chemin de rigidification. Elle ne permet pas davantage d’identifier une carence en ascorbate comme cause du changement de composition.
Dans les poumons, le foie, les reins ou le muscle cardiaque, une réparation persistante peut également transformer l’architecture et diminuer la fonction. Ces organes partagent certains programmes de fibrose, mais les agressions initiales diffèrent. Démontrer l’importance de la vitamine C dans l’entretien tissulaire ne suffit donc pas à lui attribuer une cause commune à toutes leurs maladies. De même, améliorer un mécanisme cellulaire ne garantit pas un bénéfice clinique : un grand essai de supplémentation en vitamine C n’a pas réduit les événements cardiovasculaires dans la population étudiée.
La proposition la mieux étayée est ainsi que l’ascorbate contribue à la qualité du collagène, à l’intégrité cellulaire et à plusieurs niveaux de régulation de la réparation. Une carence peut compromettre ces fonctions. La possibilité qu’elle favorise, dans certains contextes, une réparation fibreuse plutôt qu’une restauration fonctionnelle mérite d’être étudiée. En revanche, ni sa prédominance parmi les causes de fibrose, ni une priorité donnée au collagène I, ni la réversibilité des lésions par supplémentation ne sont établies. Préserver cette distinction permet de présenter une hypothèse féconde sans transformer sa cohérence apparente en preuve.